这个研究院是什么
2026 年 10 月 25 日建院。不设实体、不注册机构,不冒充学术单位,以民间研究者 + AI 工具实名做事。
只做四件事:文献整理、资源记录、方法探讨、科普发声。不做疗效宣称,不碰诊疗建议,成分结论一律带出处。
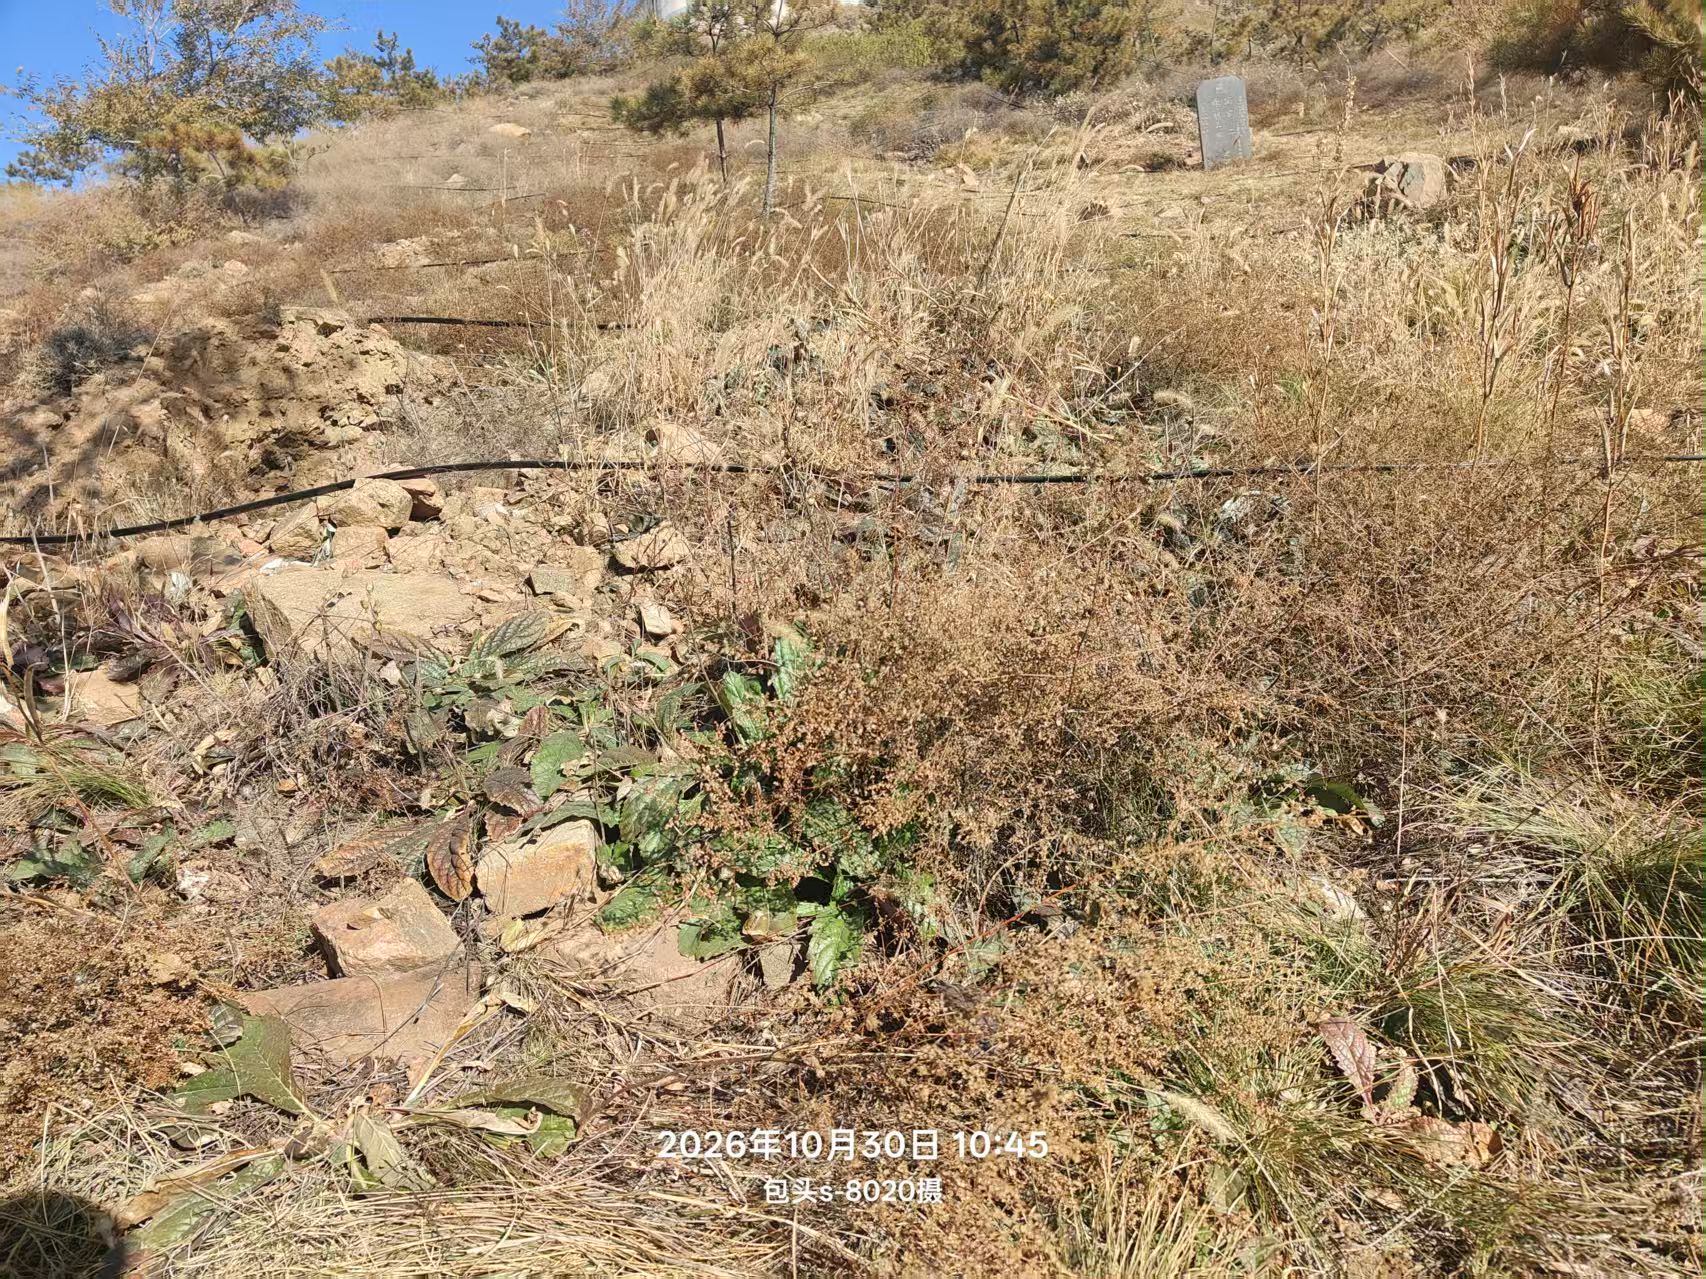
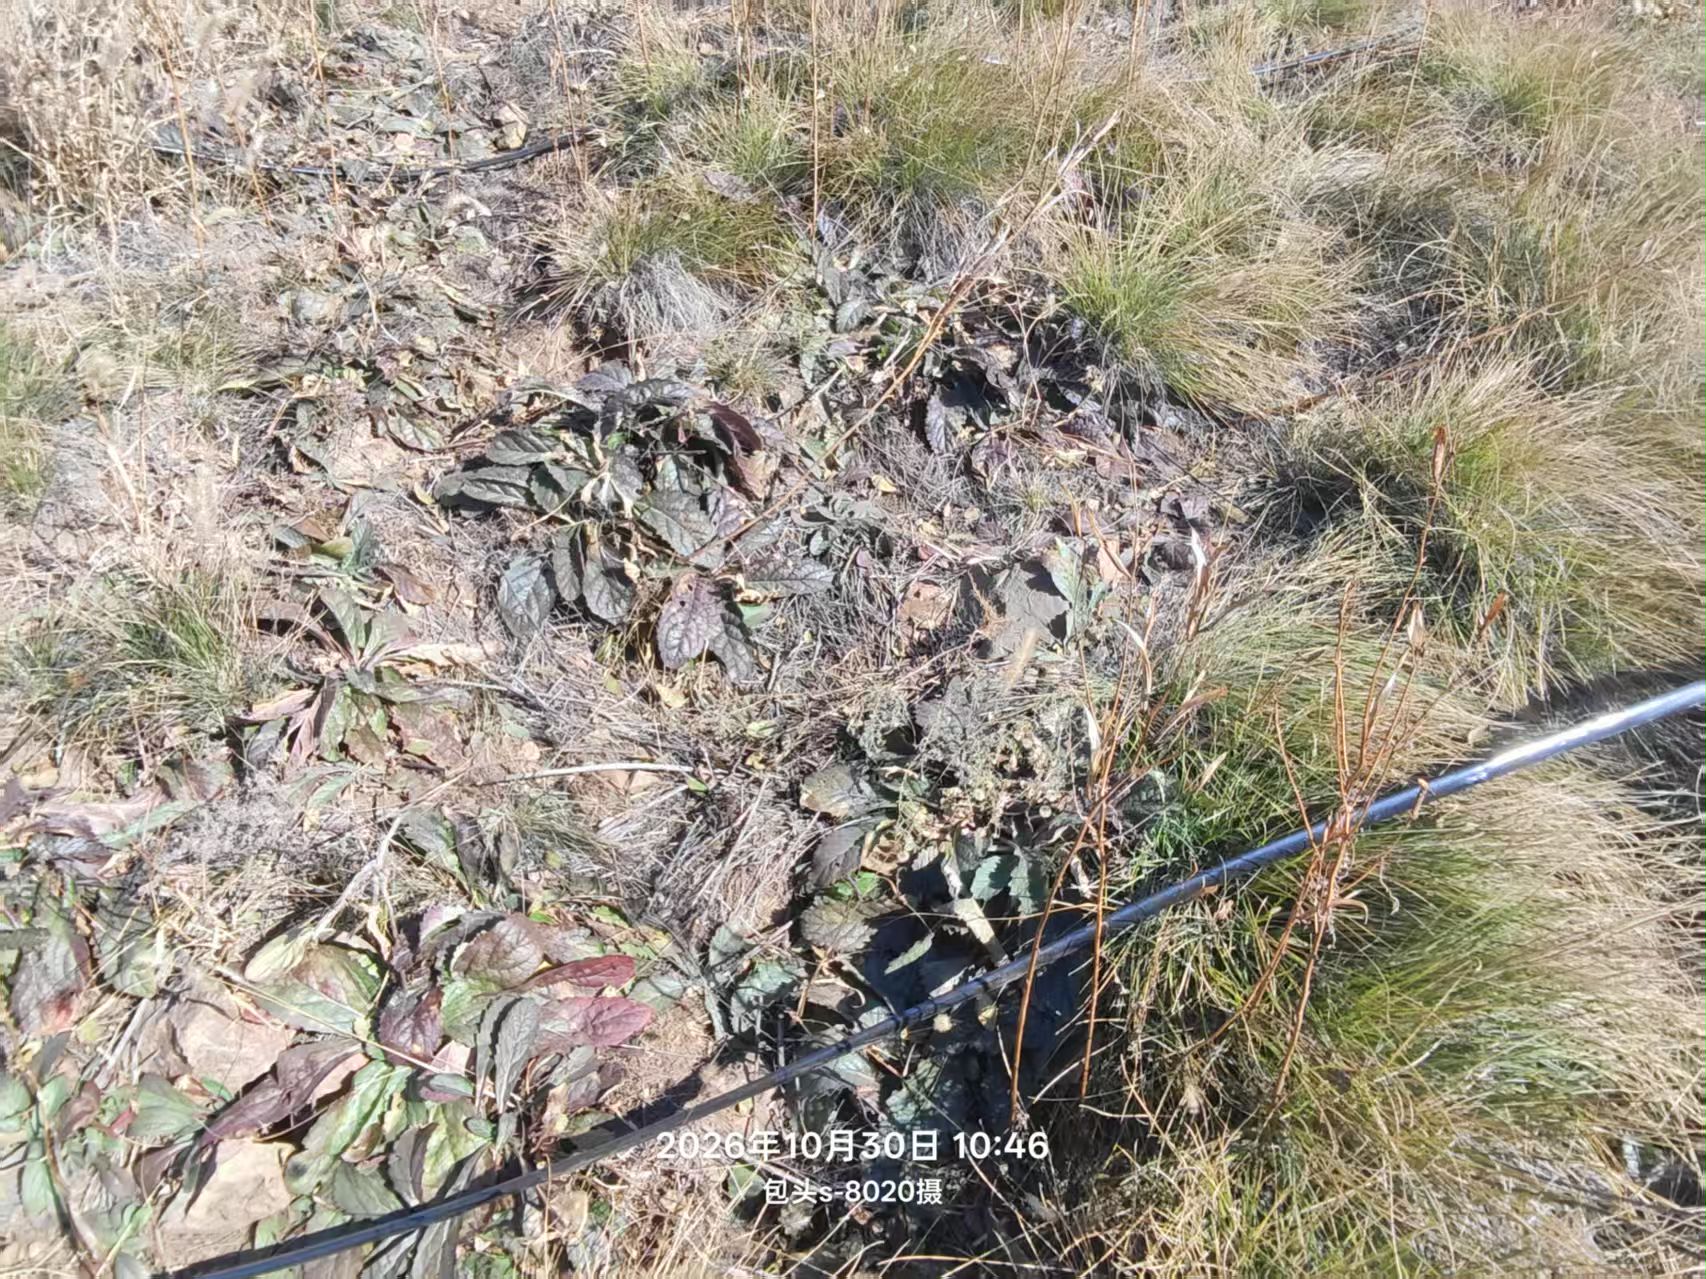
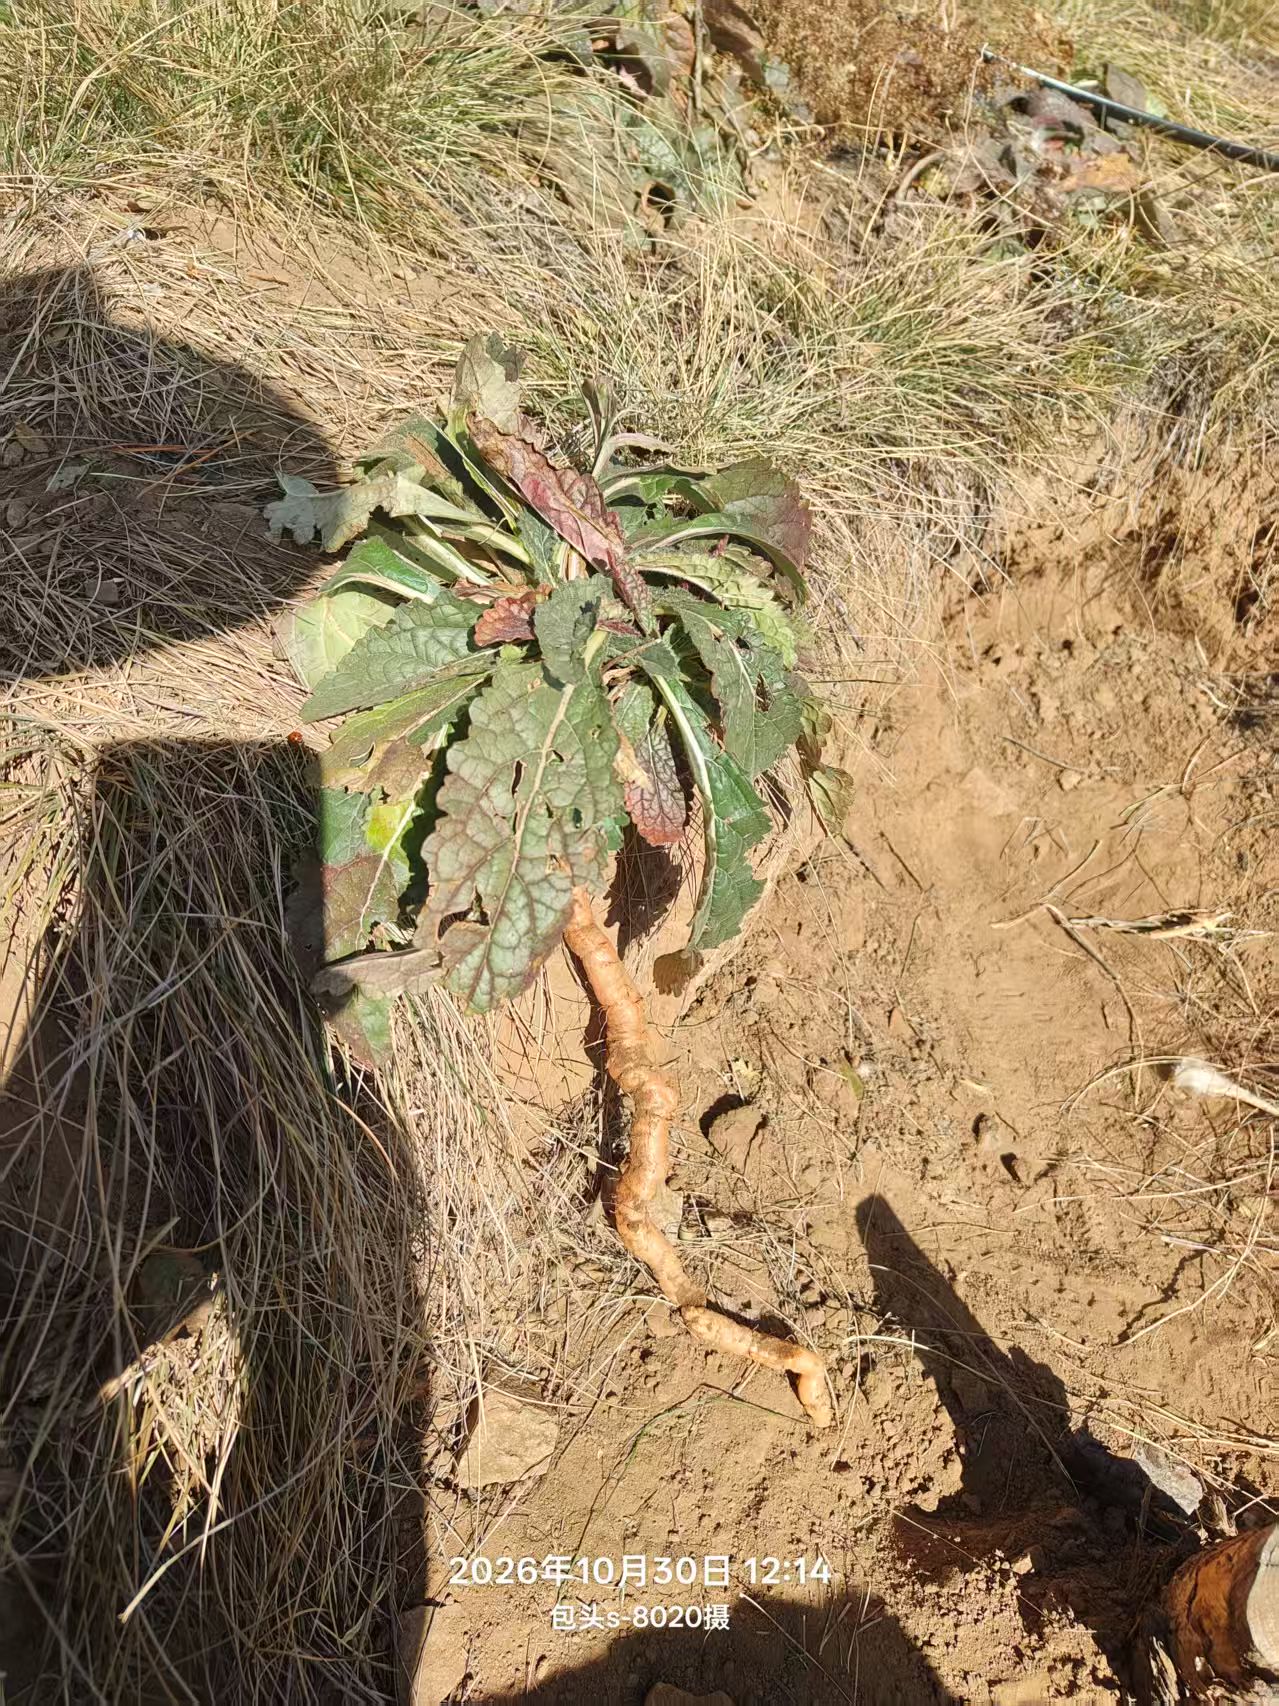
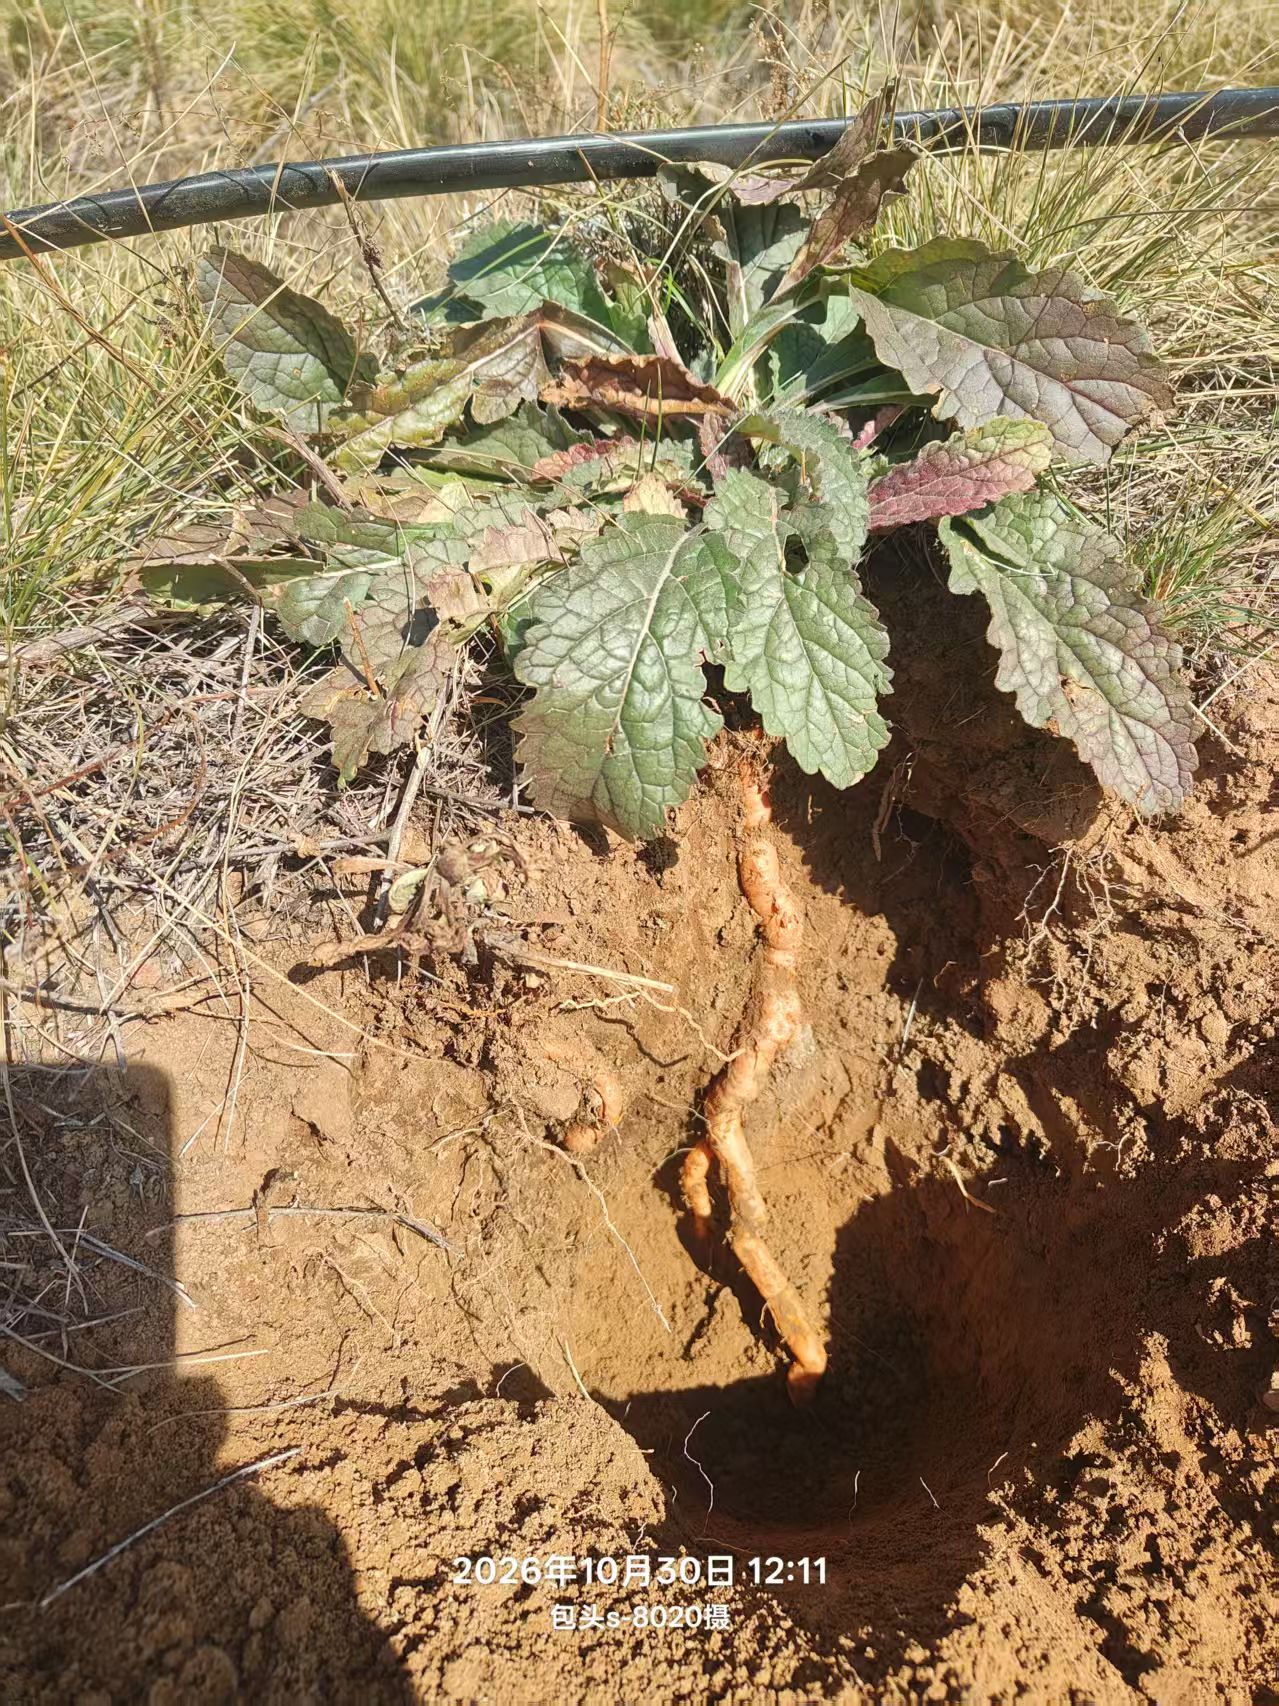
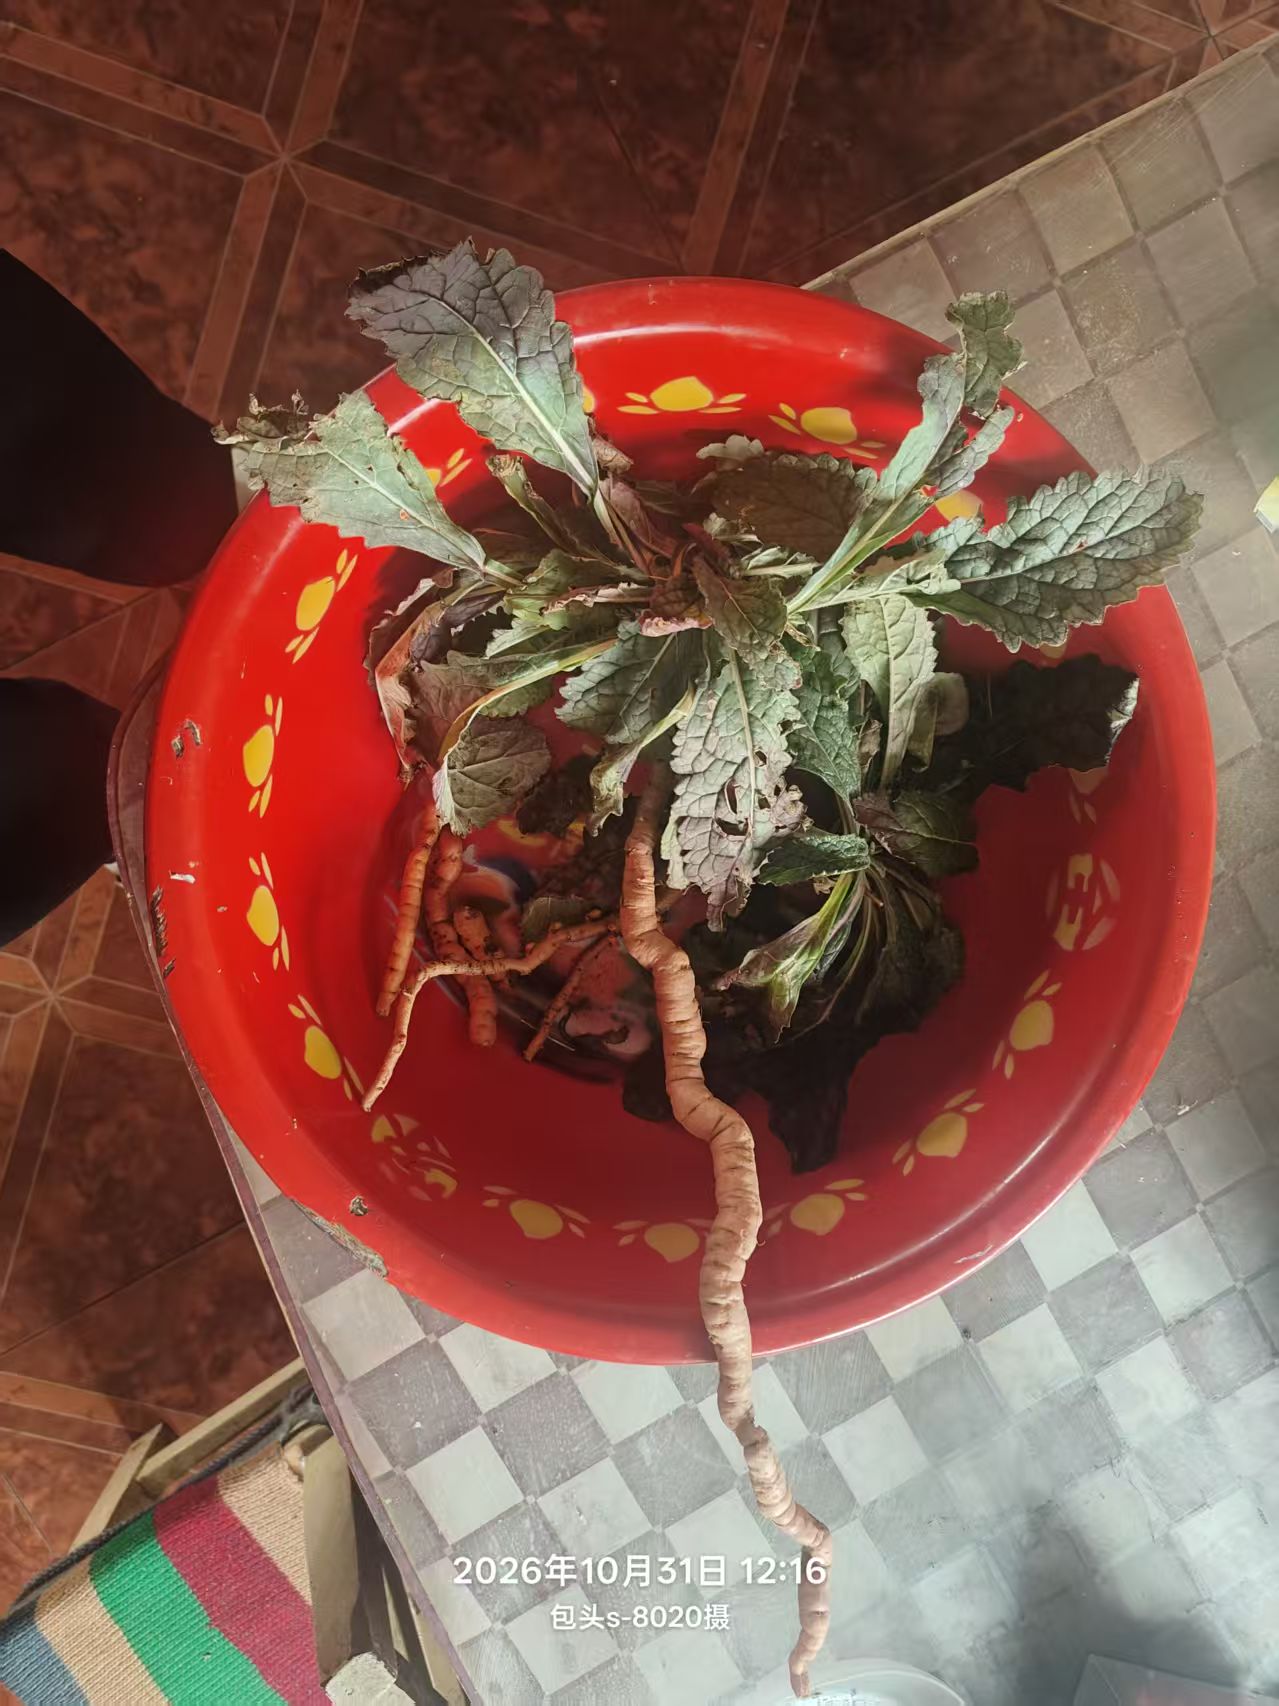
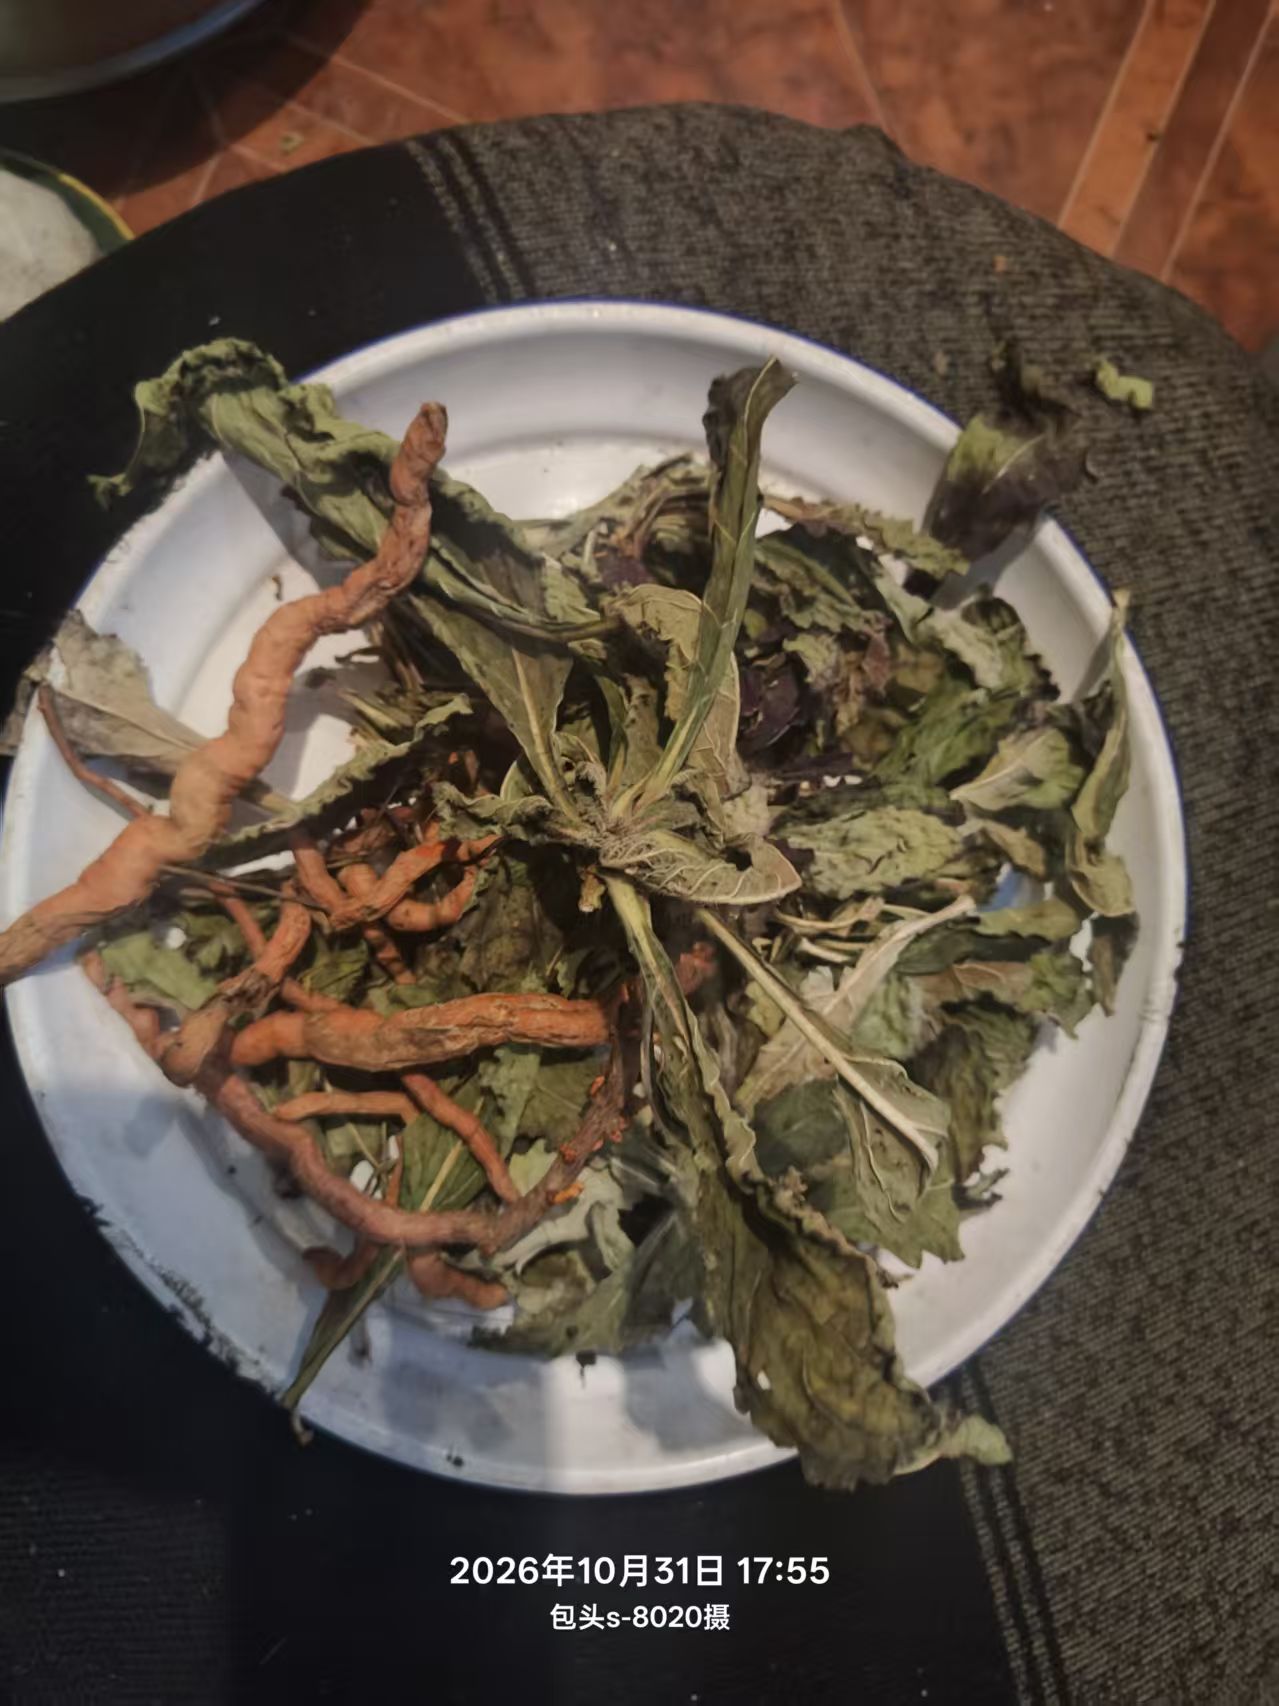
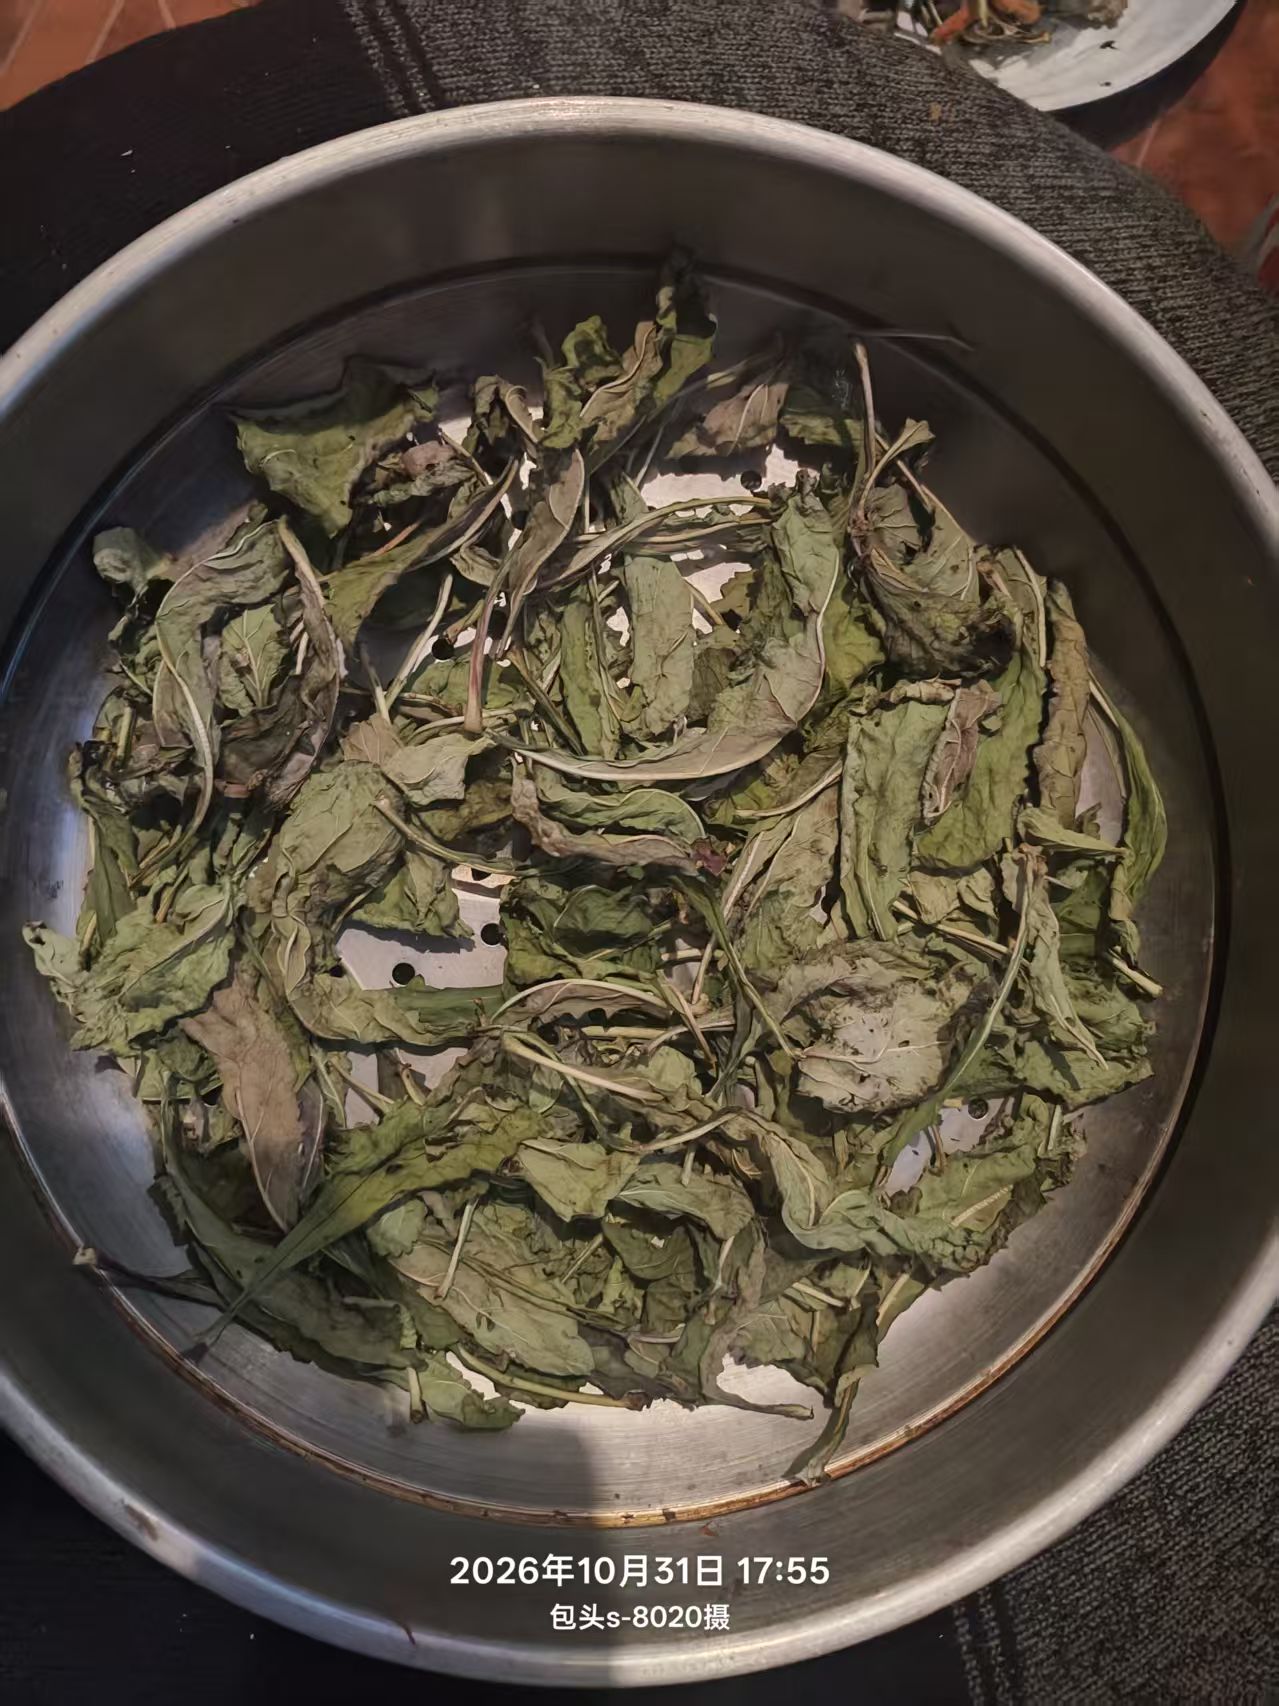
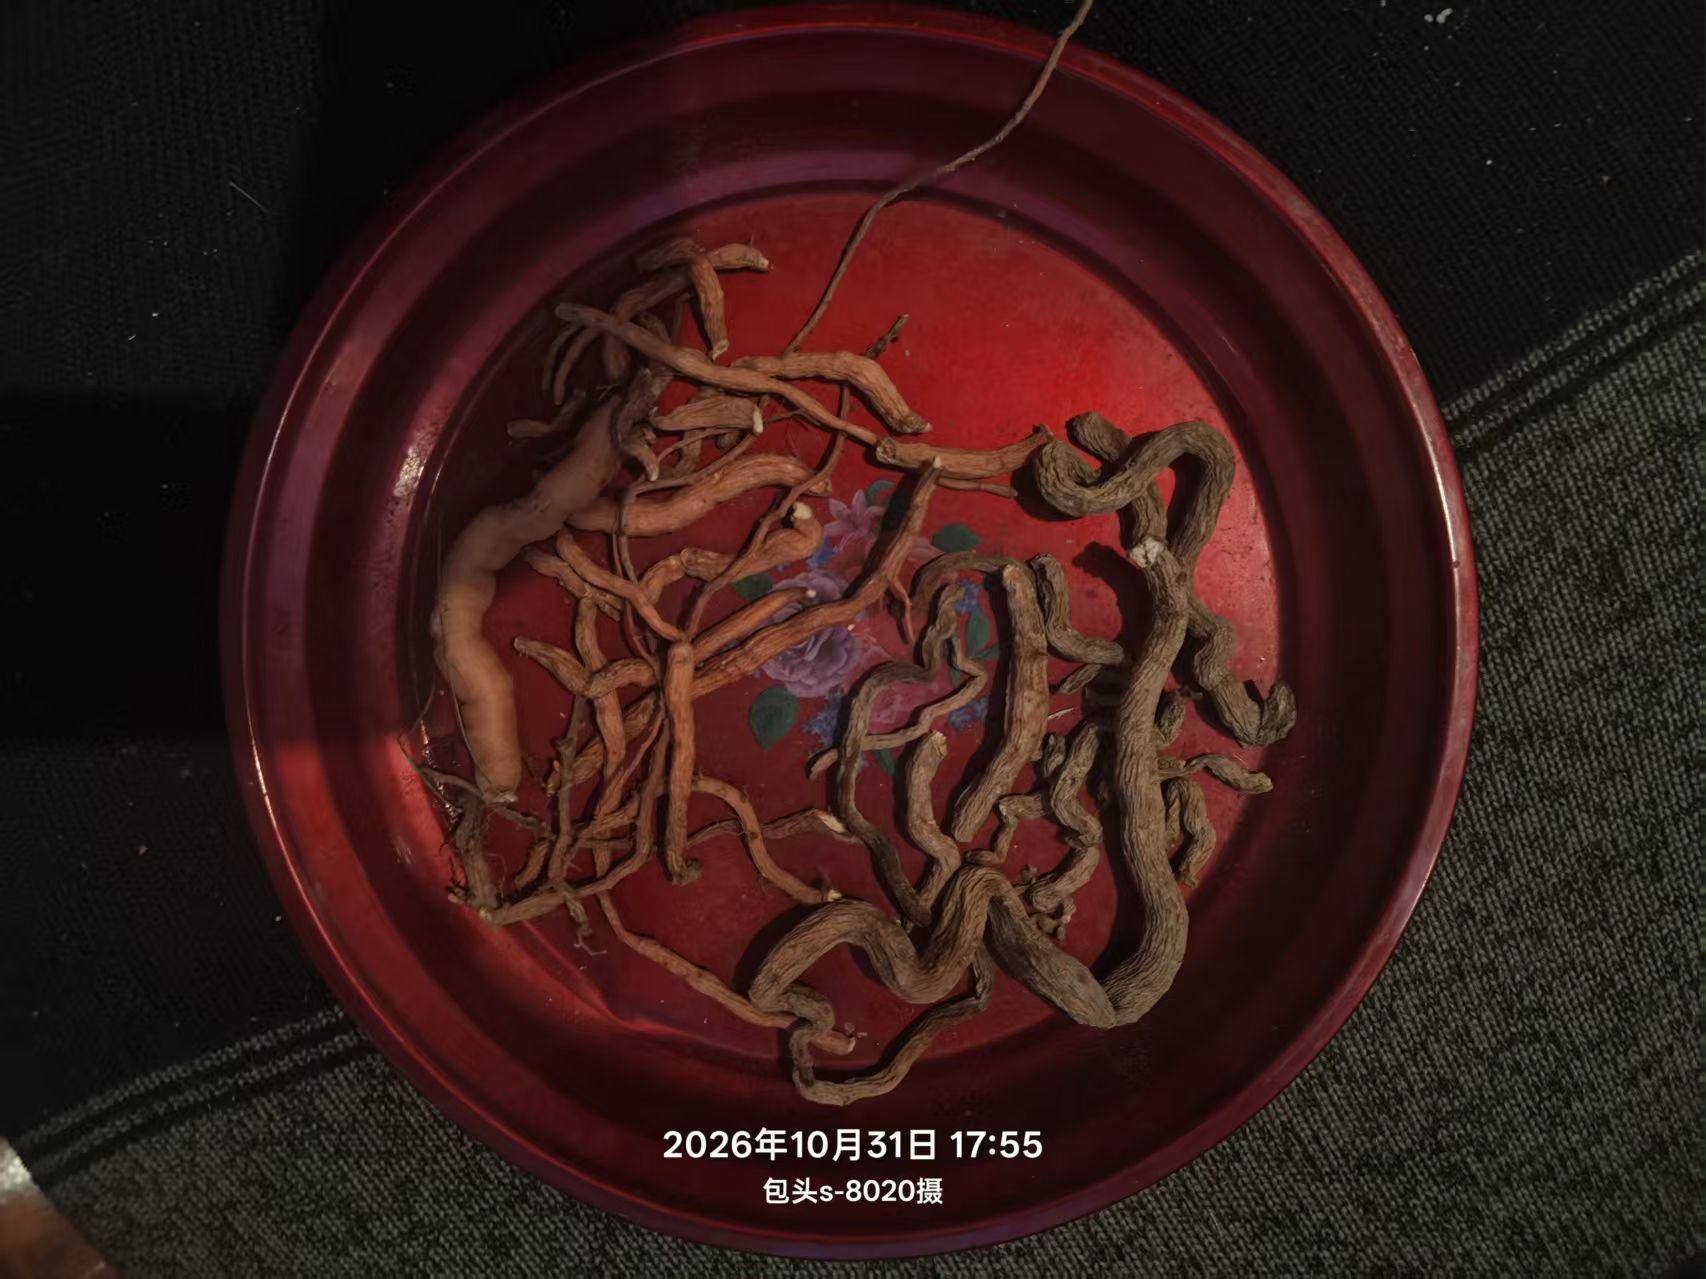
C 区 C 点(11-15 入册,八区最后一格)
40°34′35″N / 110°8′58″E · 海拔 1,160.4 m · 山顶→C 214°(西南)
全项目最高采样点,比 F 区(1,120 m,未见)还高 40 m——直接推翻"1,120 米以上近绝迹"的旧判断。
A 区 A1 点(11-15 入册,分区更正)
40°34′15″N / 110°8′49″E · 海拔 1,063.2 m · 山顶→A 30°(东北)
分区更正:原记 C 区 c1 实为 A 区 A1,原 c1~c6 全部改称 A1~A6;该点即 10-30 首采点。雨天实测,坐标与方位角存证齐全。
B 区 B 点(11-05 测、11-15 补报)
40°34′28″N / 110°9′4″E · 海拔 1,097.8 m · 方位 ≈0°(北)
指南针截图存证。海拔仅次于 F 区;密度与株型下次补测。
G 区 · 北沟南坡(11-15 全要素入册)
40°34′29″N / 110°8′50″E · 海拔 1,086.4 m · 山顶→G 99°(东)
最大叶展 45 cm,百米内约 50 多棵、大小株都有;林下生长。一处见旧滴管但无出水口,复核确认无滴灌网、无农药——八区中种群密度仅次于 D 区;海拔比 11-13 推断的适生上限还高 6 m。
H 区 · 松林下(11-15 新入册)
H1:40°34′34″N / 110°8′53″E · 海拔 1,076.3 m · 山顶→H 222°(西南);H2 同坐标、海拔约 1,070.3 m(低约 6 m)
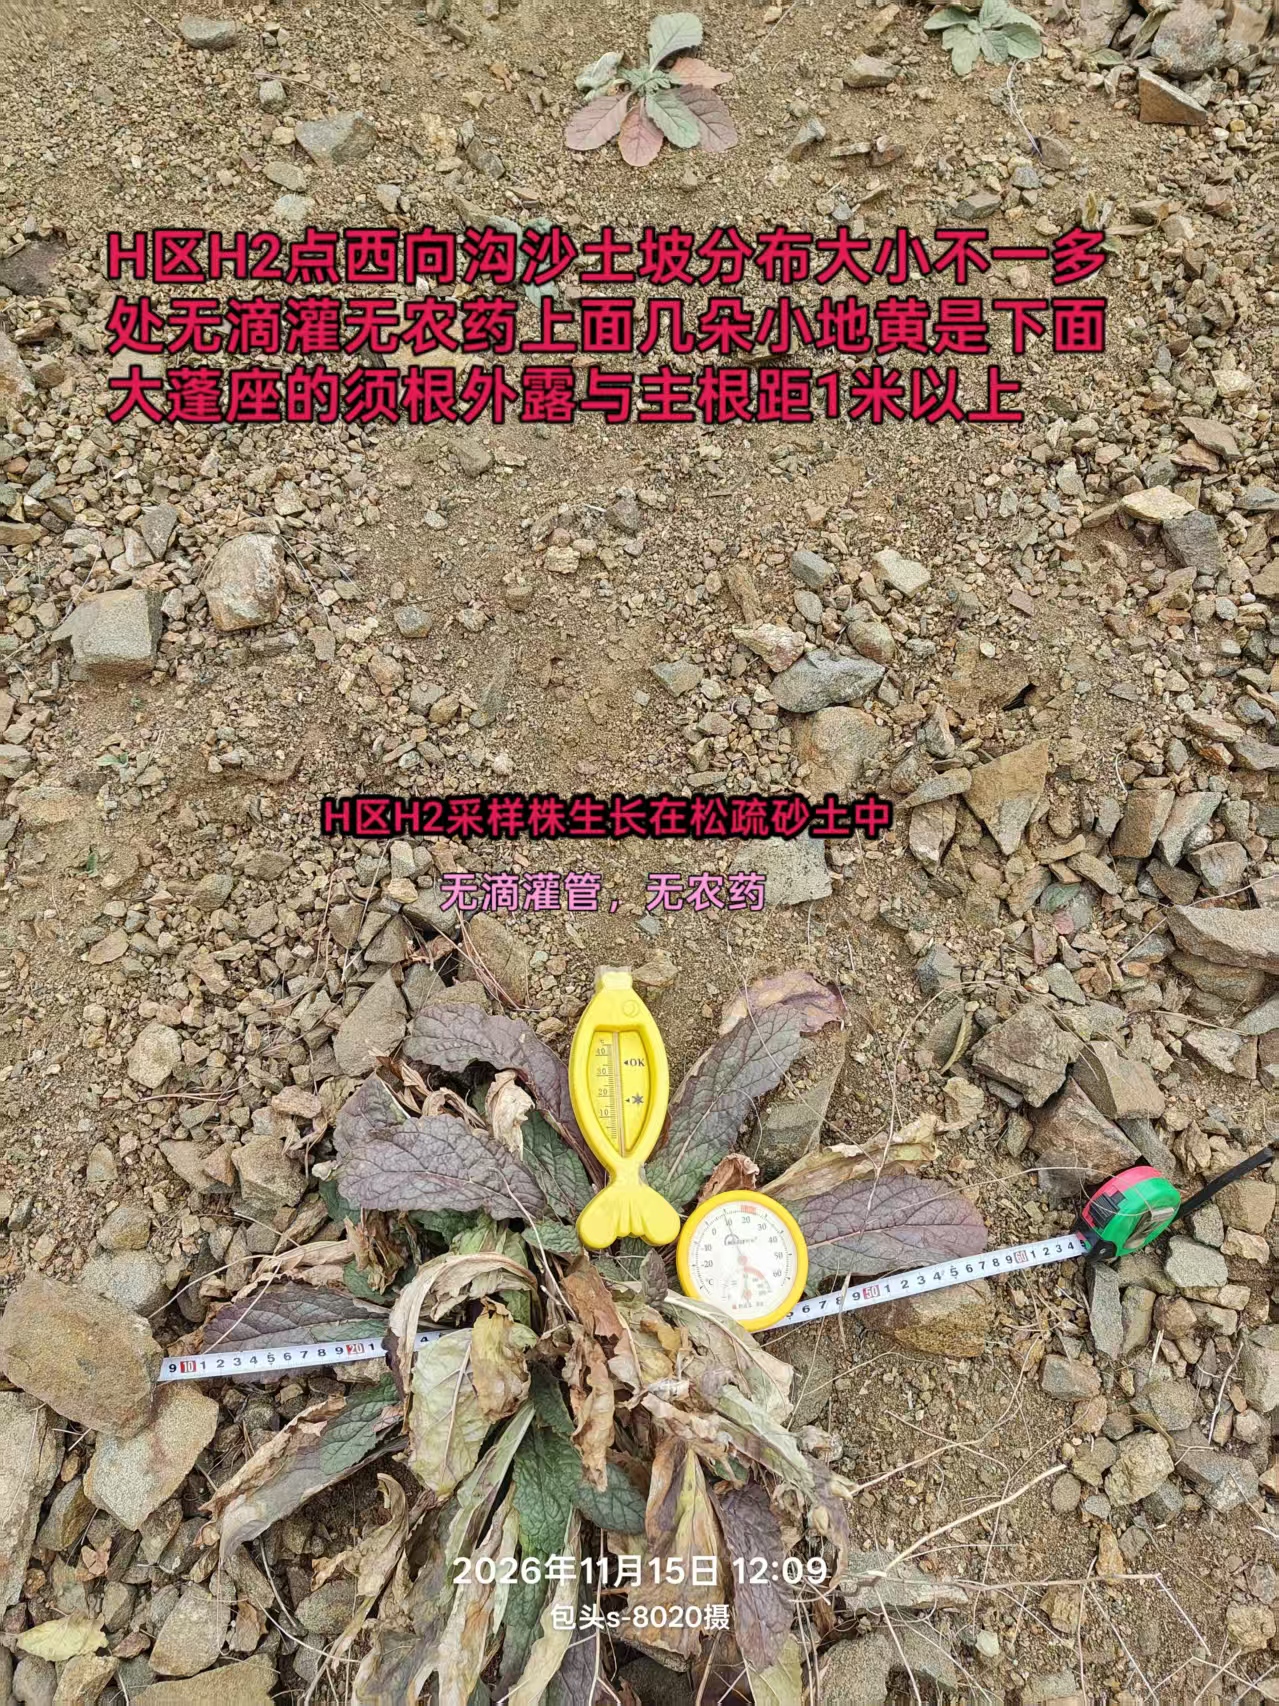
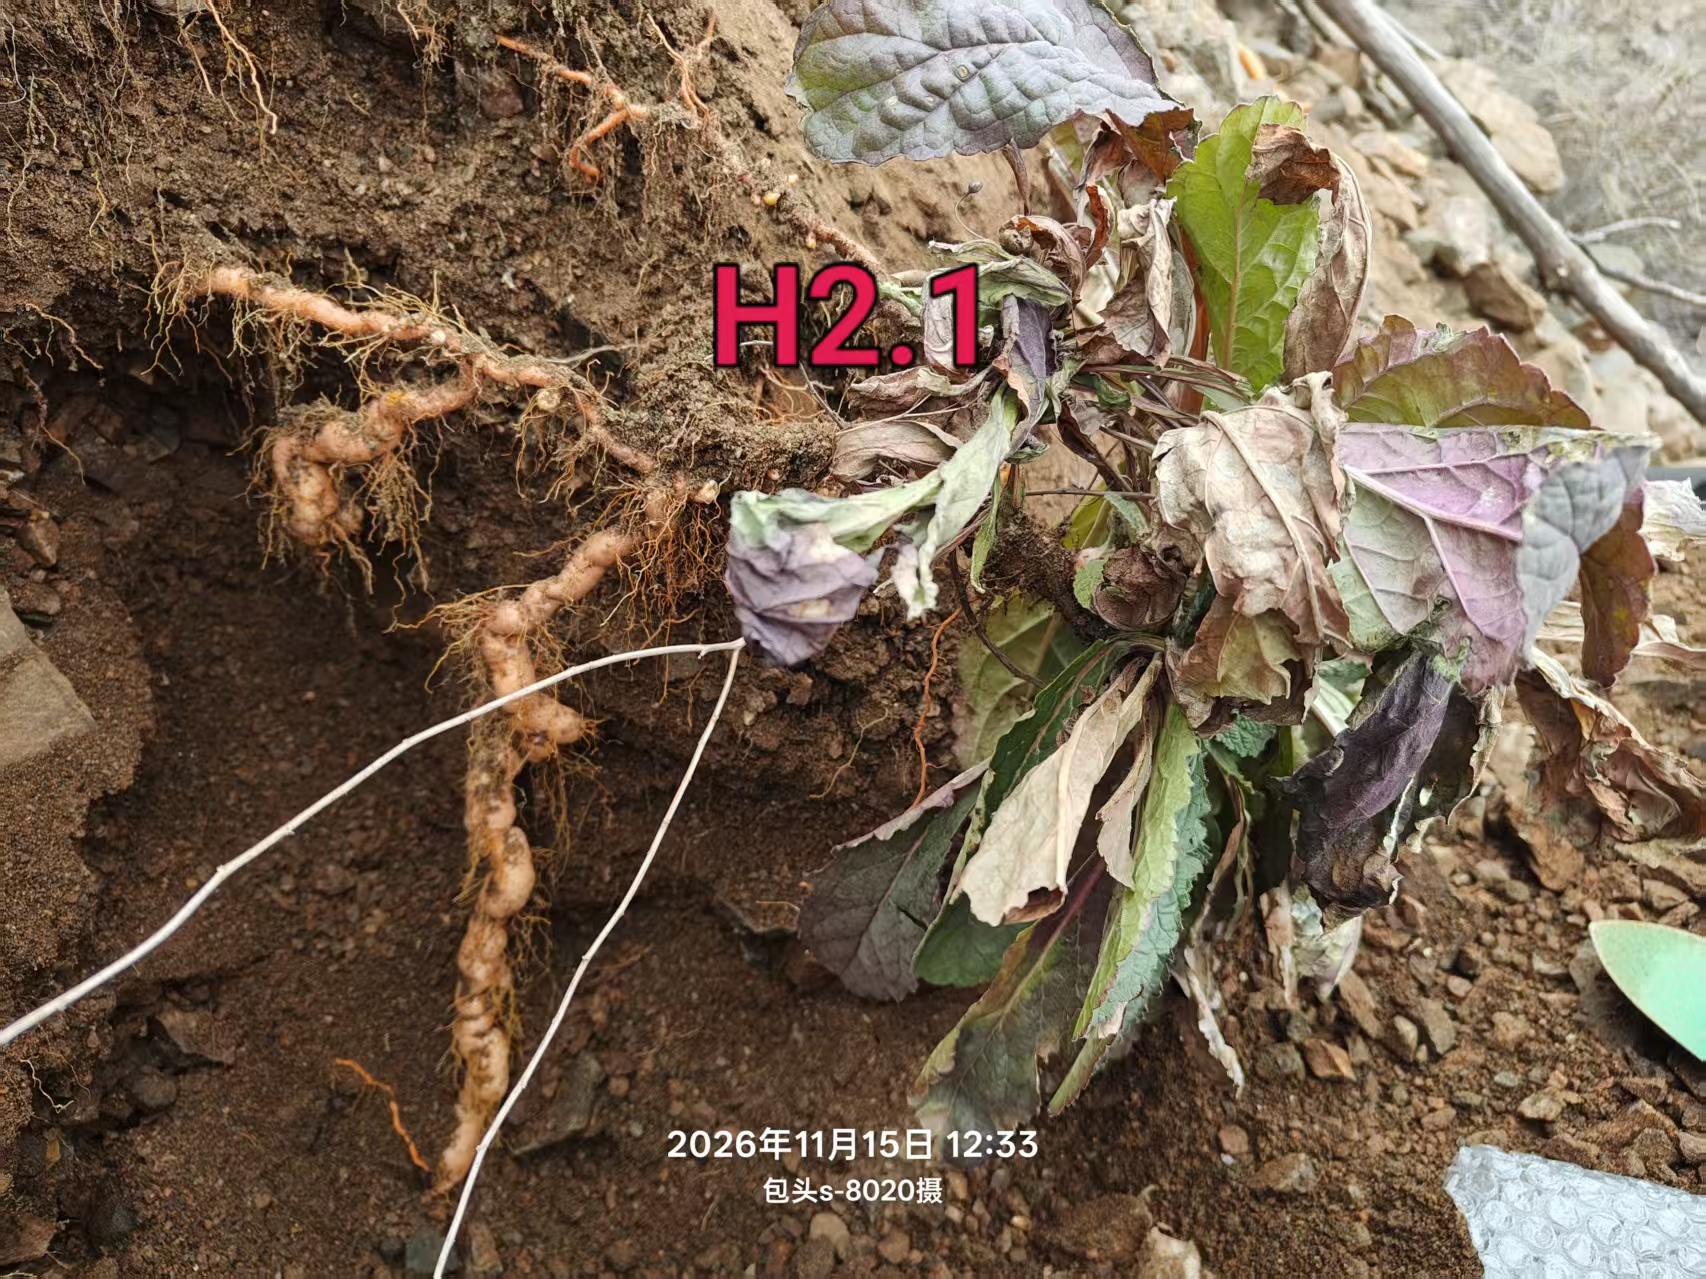
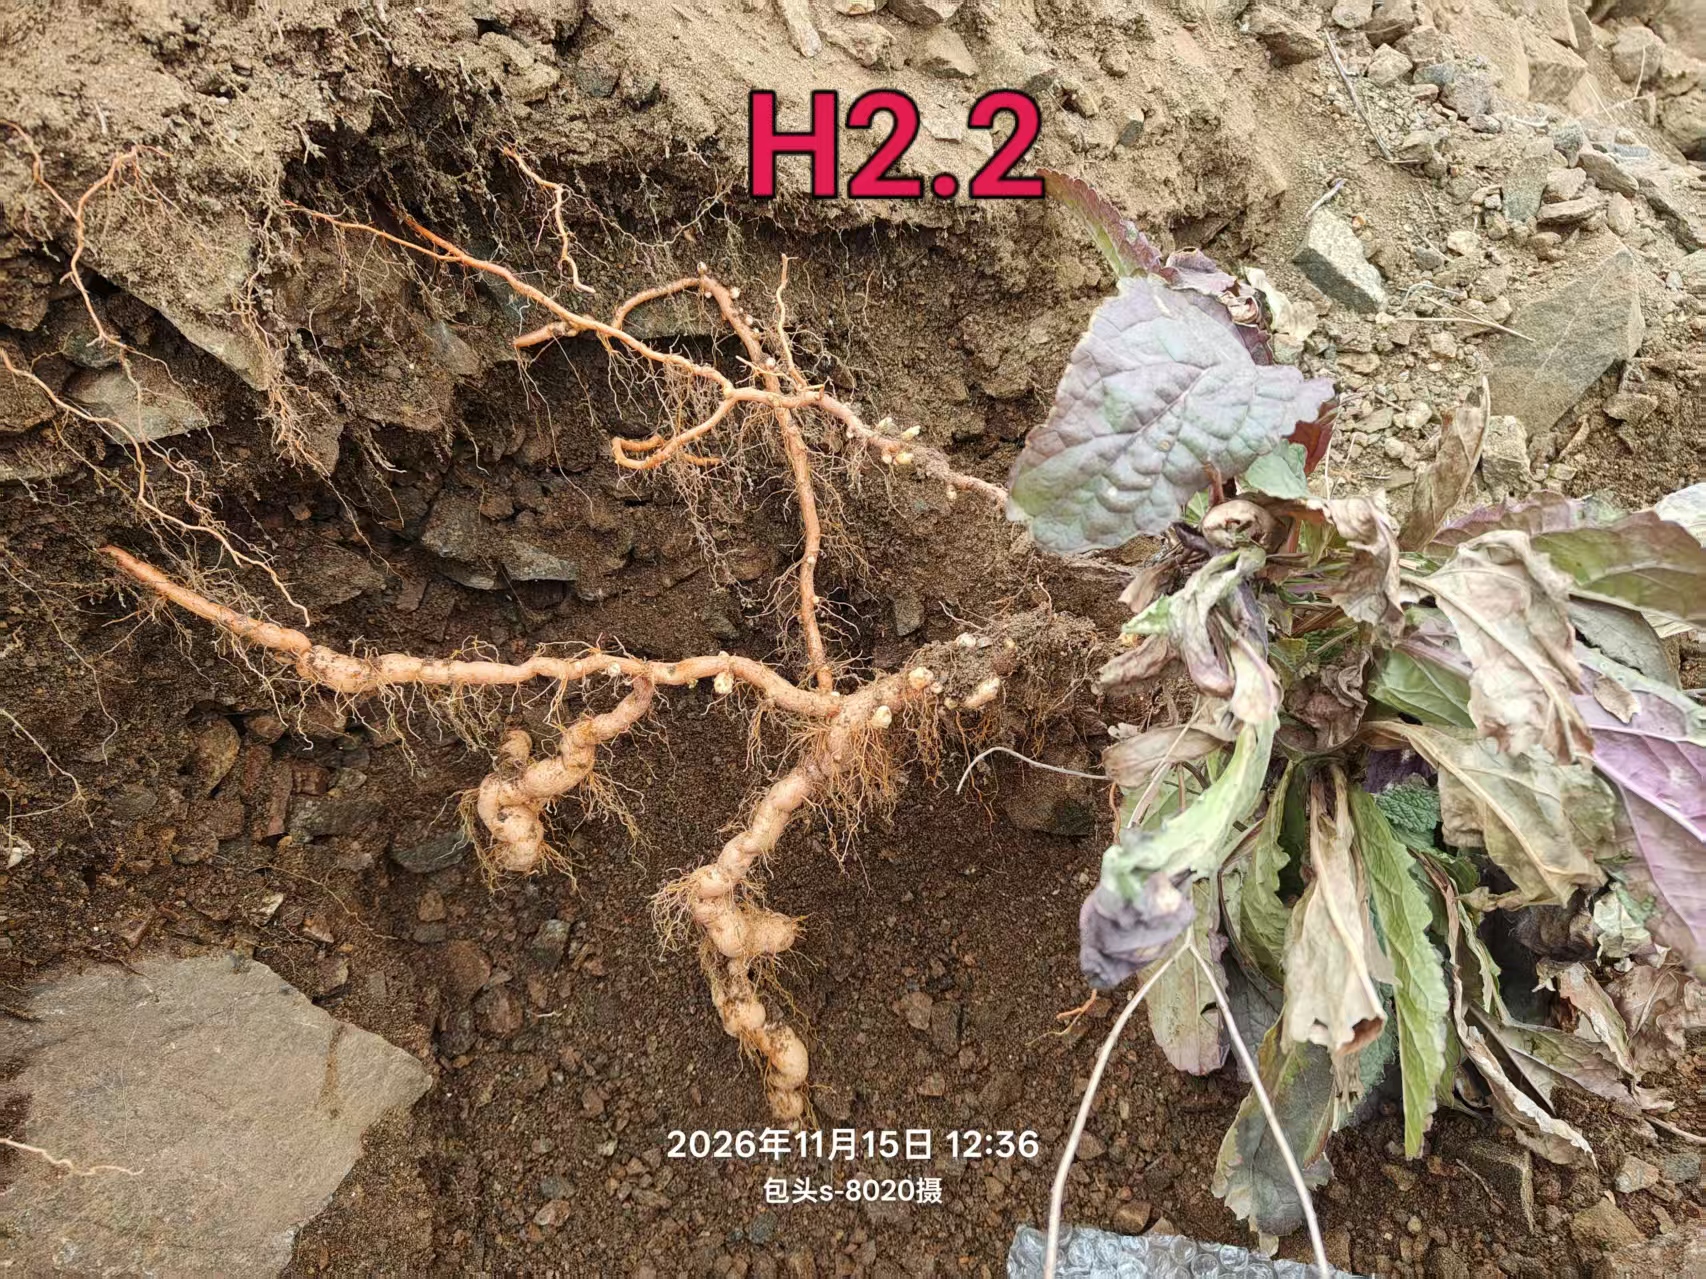
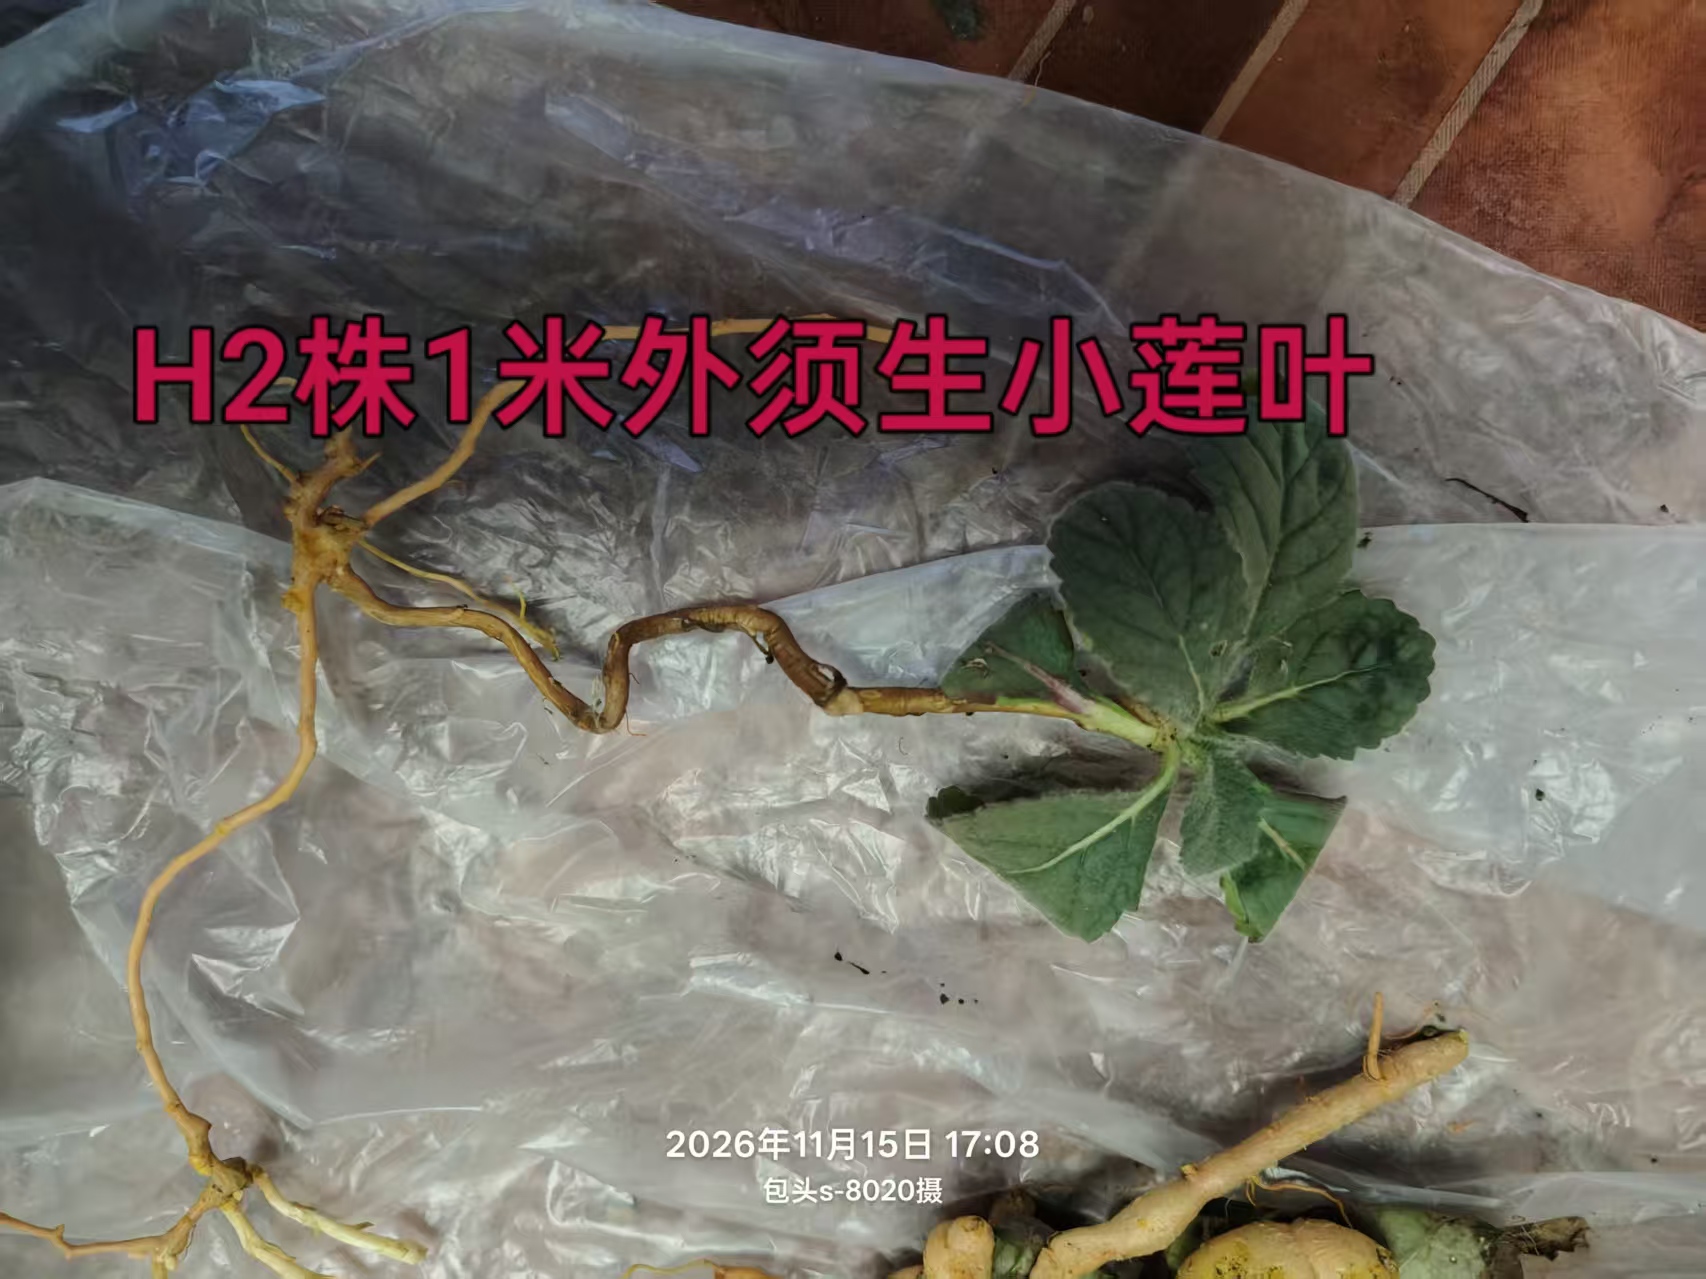
H1 叶展 32 cm;未见滴管、未见农药。海拔近 1,080 米仍有健康株——松林遮荫下也能存活。同日 H2 点(西向沟沙土坡)挖根两处:横向走根串珠状膨大,地上散布小株实为大蓬座外露须根(离主根 1 m 以上同源)——首次记录到根系克隆扩张证据。
D 区 · 谷底
40°34′13″N / 110°8′45″E · 海拔 1,016–1,021 m · 山顶→D 213°
地黄密集:100 米谷线采叶 1,030 g,折算约 60 株、每 1.65 米一株。整条沟无滴灌网、不打药。
E 区 · 半坡
40°34′21″N / 110°8′47″E · 海拔 1,058 m · 山顶→E 236°
少量地黄,叶径 15.0 cm;枯黄老株与新株共存,种群在自然更新。画面上方有黑色滴灌带通过——与 D 区正好形成对照。
F 区 · 近顶
40°34′33″N / 110°9′0″E · 海拔 1,120 m · 山顶→F 84°
百米范围内一株未见。三点中海拔最高,也是唯一"零记录"的点。
一条海拔线,把分布说清楚了
| 点位 | 海拔 | 地黄 |
|---|---|---|
| D 区(谷底) | 1,016 – 1,021 m | 密集,可采集 |
| E 区(半坡) | 1,058 m | 少量 |
| A 区 A1(原误记 C 区 c1) | 1,063.2 m | 已入册(10-30 首采点),密度待补 |
| B 区 B 点 | 1,097.8 m | 已入册(11-05 测),密度待补 |
| H 区(松林下) | 1,076.3 m | 有,叶展 32 cm;H2 见串珠状走根 |
| G 区(北沟南坡) | 1,086.4 m | 较多,约 50 株 / 100 m |
| C 区 C 点 | 1,160.4 m | 有采样点(全项目最高) |
| F 区(近山顶) | 1,120 m | 未见(孤例,待复核坡向) |
八个点连成一条线,八区收口:地黄主力带从沟谷一直延伸到山顶林缘——主力在 1,000–1,080 米,但 C(1,160.4 m)有采样点、G(1,086.4 m)约 50 株/100 m,F(1,120 m)反而未见,坡向与微地形的影响可能大于海拔本身。林下型(G、H)与敞坡型(D、E)都能成活,对遮荫的耐受也比原先估计的宽。
当日另一项首次记录来自 H2 点(西向沟沙土坡,松疏砂土):两处挖根剖面均见沿沙层横向延伸的走根,走根上隔段膨大成串珠状块根;地上散布的"小地黄"并非实生苗,而是下方大蓬座外露的须根,离主根 1 米以上仍同源。这证实 H 区种群靠根系克隆扩张成片,也解释了 D 区单株(104.7 g)与 H 区成片散布两种存在形态——沙土透气利于走根串生,黏重谷底则以独株大根为主。
这条线也解释了此前那个反常观察:越是滴灌顾不上的坡面,地黄反而越绿。它靠天养,不靠人养。D 区整条沟没有灌溉网、也不打药,仍能长成密集种群,说明这片野生型的抗旱下限比原先估计的更低。
单株实测(双区对比:D 区 vs H 区 H2)
| 项目 | D 区单株(11-12,谷底) | H 区 H2(11-15,沙土坡) |
|---|---|---|
| 总重 | 104.7 g | 383.1 g(家中复秤) |
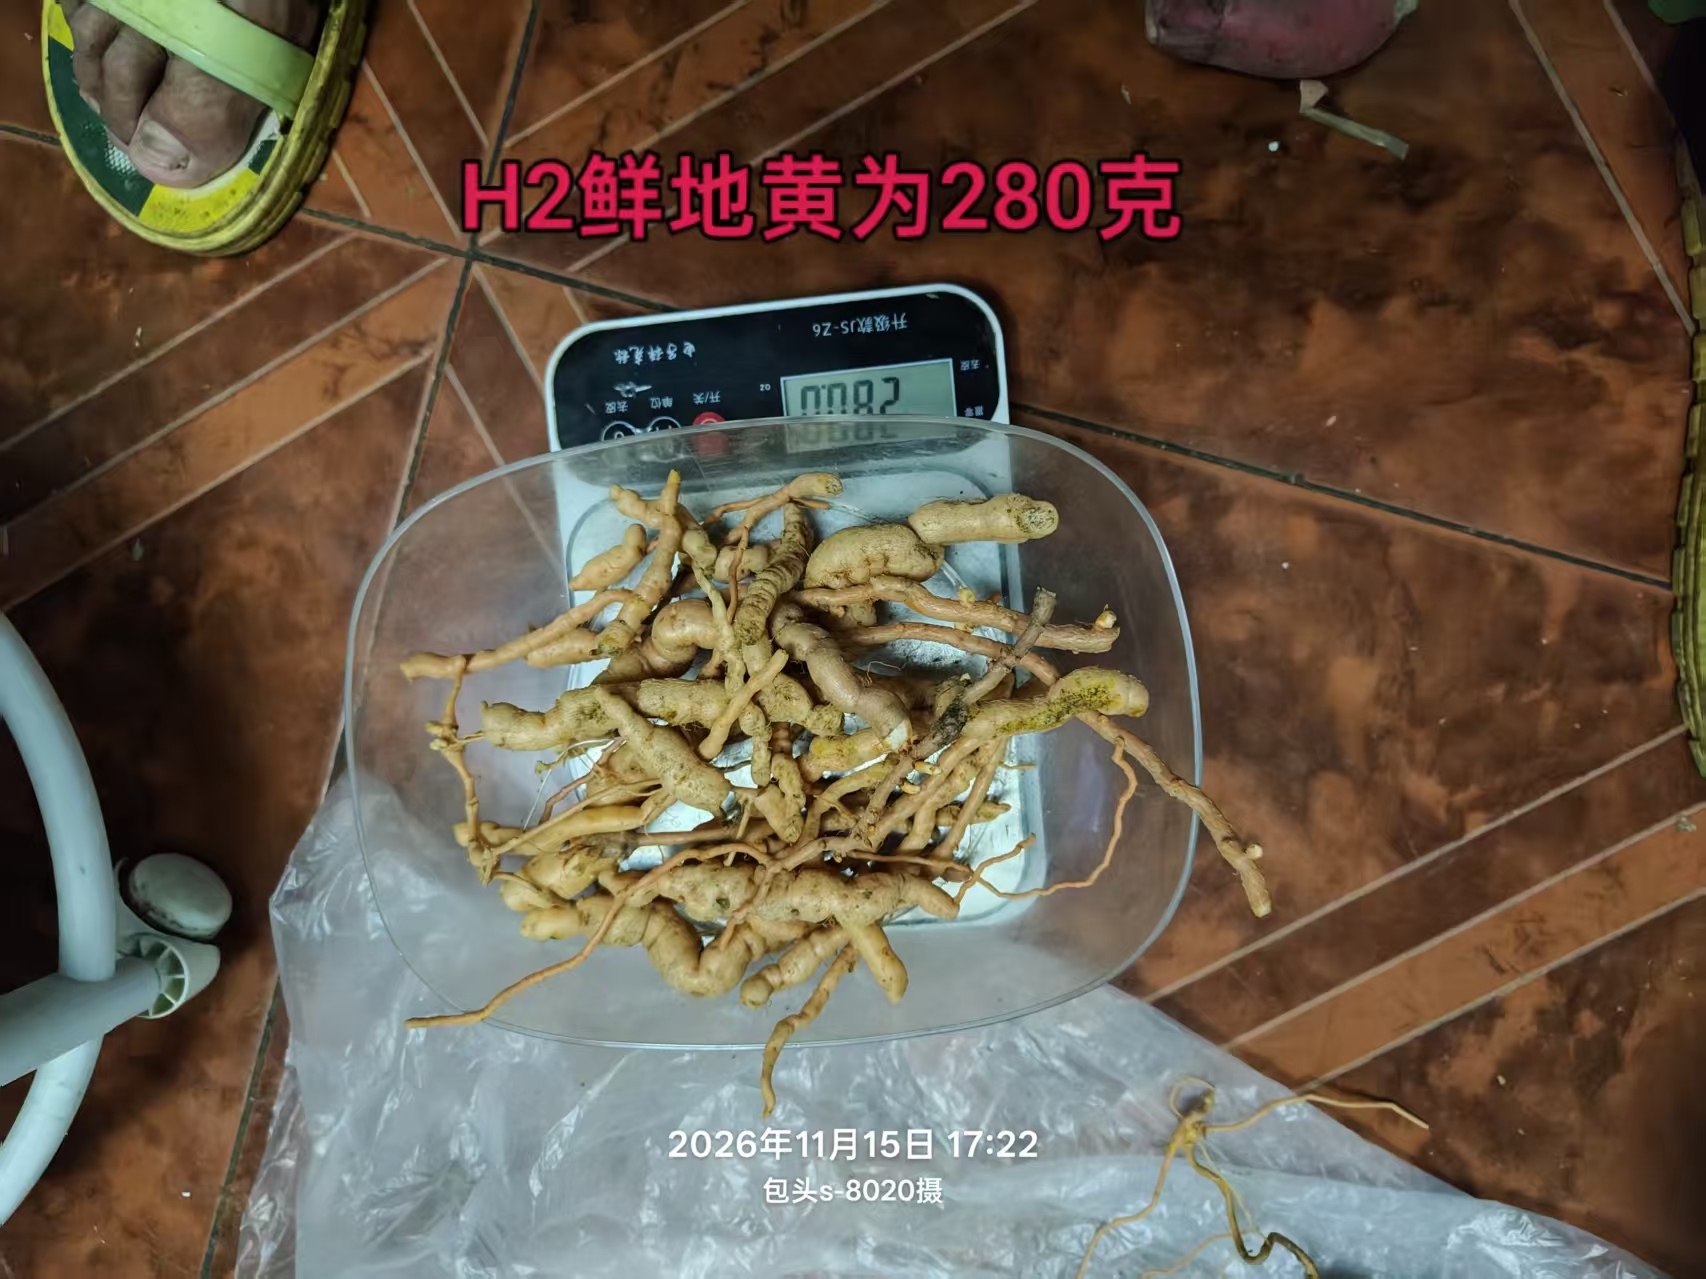
| 鲜块根 | 约 87.7 g | 280.0 g(含串珠走根段) |
| 叶 | 约 17 g | 约 103 g |
| 根 / 叶比 | 约 6.2 : 1(根主导) | 约 2.7 : 1(叶片占比高三倍) |
| 折干估算 | 26–30 g 干根(按鲜干比 3.5–4 : 1) | 80–100 g 干根(同比) |
| 叶座直径 / 叶展 | 10–30 cm(谷底株型偏小) | H1 叶展 32 cm;H2 附近最大 45 cm(G 区) |
| 参照株(D1 上部) | 叶展 34 cm,根延伸约 20 cm | — |
同一区内,谷底单株叶座 10–30 cm,上部那株 34 cm——光温条件差一档,株型就小一号。跨区看,H2 总重是 D 区样本的 3.7 倍,且根叶比从 6.2:1 变到 2.7:1:沙土克隆型把更多同化物分配给叶和走根扩张,谷底独株型则储根——生境决定策略的第一个定量支撑,也是往后分级采收的底数。
试食观察:连吃 5 天,一天一行
本院发起人本人试食,只作为食用性的一手观察记录,不是疗效试验。每日记录片数、部位、口感、体感与大便。
| 日期 | 时间 | 片数 | 部位 | 体感 / 大便 |
|---|---|---|---|---|
| 11-09 | 晨 | 2 | 外叶(紫) | 无异常 |
| 11-10 | 晨 | 2 | 外叶(紫) | 无异常 |
| 11-11 | 晨 | 2 | 外叶(紫) | 无异常 |
| 11-12 | 早饭后 | 3 | 外叶(紫,最大尺寸) | 细嚼慢咽、软绵无纤维;至 20:30 一切正常 |
| 11-13 | 早饭(8:03) | 3 | 半干叶(晒半干,清水泡发一天) | 日间无异样;晨便偏软、可见叶渣 |
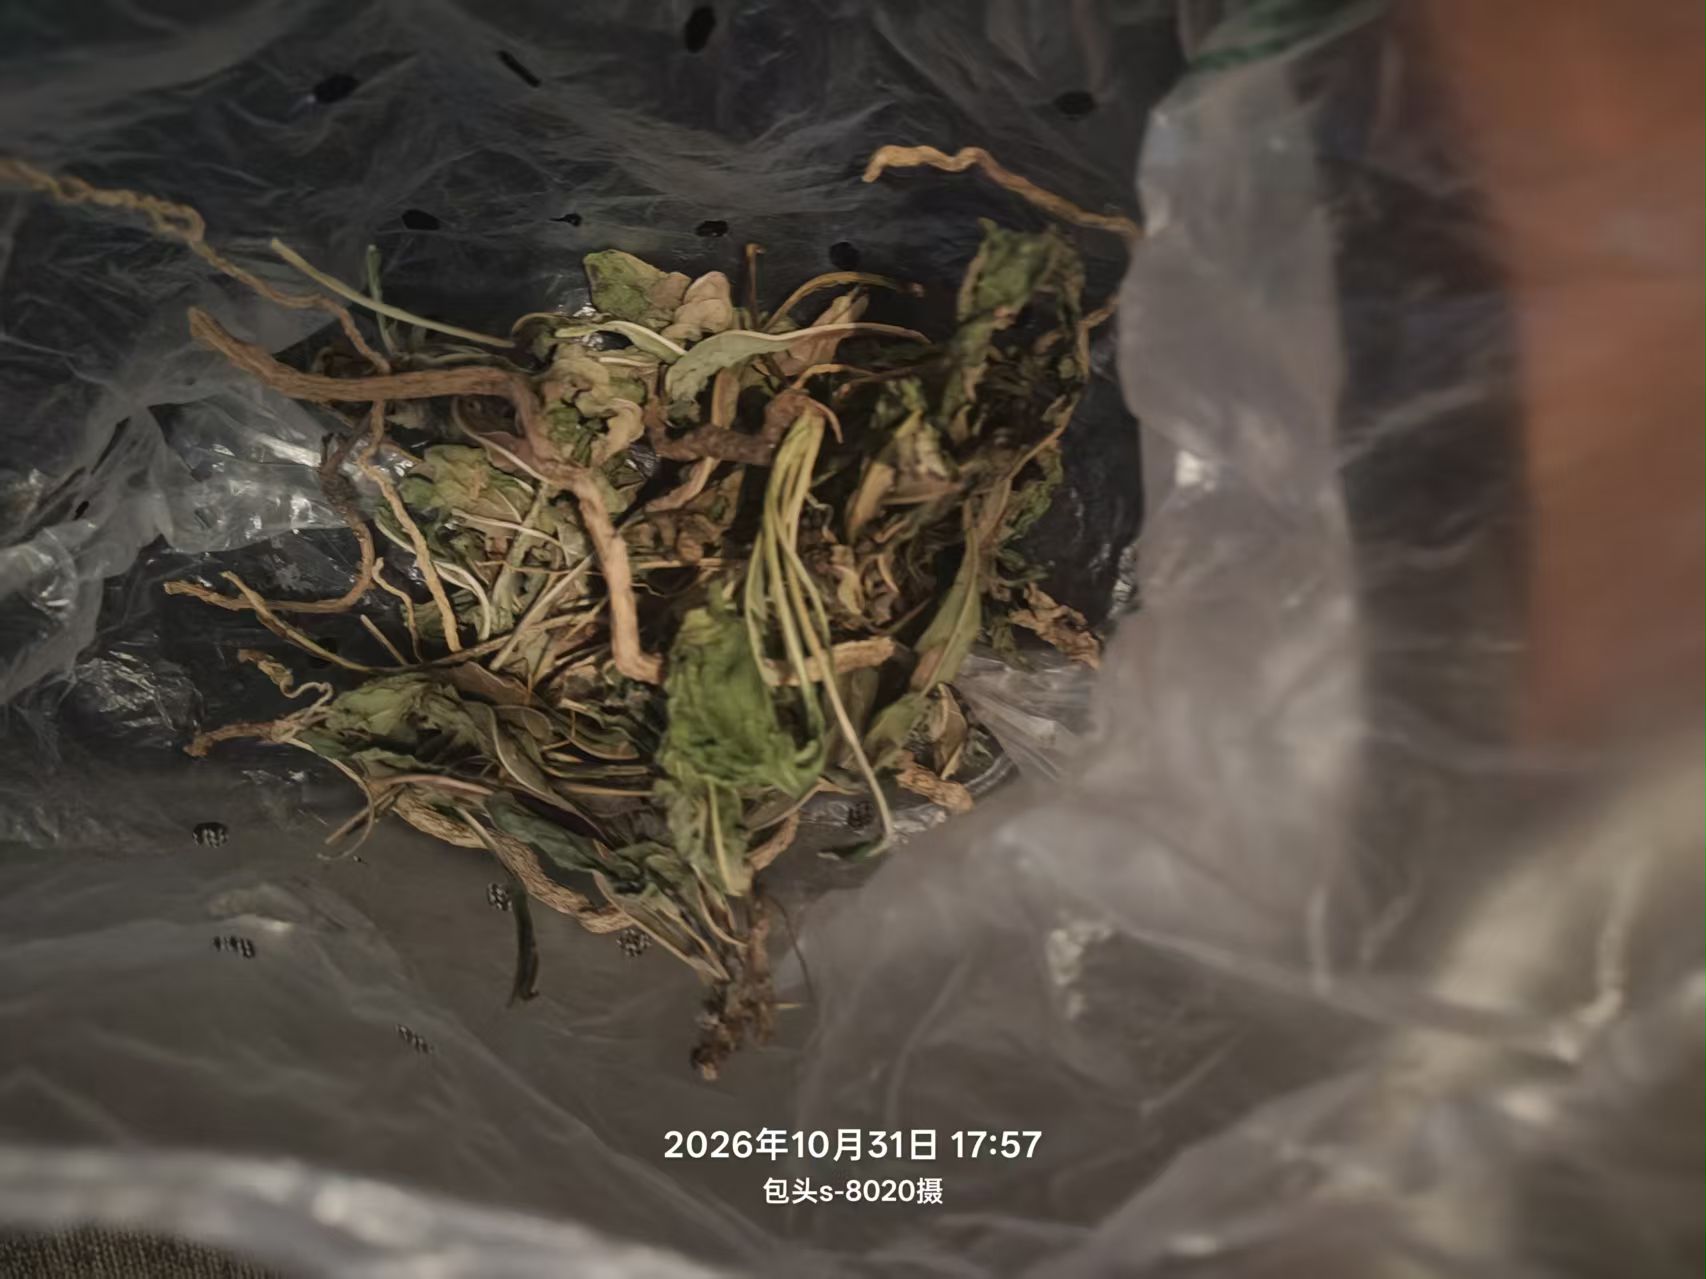
| 11-14 | 早 | 一整座 | 冷水泡发叶(叶径 15 cm 整莲座) | 未见异常;晨便成形恢复 |
三条值得记下的观察:一是内叶外叶质地均一,从内圈小叶吃到外圈大长叶都没有纤维感,说明这批叶还没走到老化那一步;二是晒半干再泡发这条路走得通,等于自制干菜复原,耐存放、干物质更浓;三是第 5 天晨便开始偏软,属寒性累积的早期信号,下一步要减量或隔天吃。
说明:以上为个人食用记录,不构成任何食用或药用建议。地黄叶性寒,脾胃虚寒者与孕妇不宜;野生采集须事先确认地块未打药、灌溉水无污染。
证据链,一条一条接起来
- 1994|中国中医科学院中药研究所周燕生、倪梅玉:首次系统报道地黄鲜叶化学成分,鲜叶梓醇含量高于根。一篇没激起水花的翻案文章。
- 2015|《广州化工》许继承等:同一套 HPLC 方法测下来,干叶梓醇 9.93 mg/g,熟地黄 12.54 mg/g——同一数量级。一片被当垃圾扔的叶子,只低两成。
- 2016|中国医学科学院药用植物研究所等:同法测定叶不同生长期的梓醇、桃叶珊瑚苷、京尼平苷酸,界定最佳采收窗口。
- 2017|南京中医药大学段金昊团队:地黄叶总苷与地黄叶总苷胶囊中马鞭草苷的药代动力学比较——说明它已经不是研究对象,是有制剂的产品。
- 2024|贵州医科大学附属医院:地黄叶总苷胶囊经线粒体自噬途径改善核苷类药物所致肾损伤(PMID 38514261)。
- 2026|河南中医药大学尚婷、李伟峰等八人:裂叶地黄与野生地黄多部位质量分析,叶部综合质量最佳,抗 HepG2 抑制率叶部最高。
- 2024–2026|分子通路:RgIO 基因克隆(2024)、RgMYC2-Rg10HGO 调控梓醇合成(2025)、两个 RgRHM 基因功能验证(2026)——从"叶里有什么"到"叶子怎么造出来的",链已闭合。
工艺
提取纯化与制剂工艺研究极少,2023 年那篇微乳负压空化提取孤零零站着一篇。
叶用型种质
所有种质研究都在为"根用药"服务,从没人提出"叶用型地黄"这个育种目标。
抗肿瘤体内验证
只有体外 MTT,没有动物模型,没有通路机制。性价比最高的空白。
质量标准
成药已在临床用,却无一篇药典级、地方标准级的地黄叶质量标准研究。
多组学关联
叶部代谢组与基因组变异的 GWAS/QTL 关联,尚无人做。
坡上的真相:滴灌浇的是树,不是它
这里要把一句话说清楚,免得外面误读。坡上那两条滴灌带,是造林保树用的。大青山干旱,年年绿化、年年死树不少,死树留下的干枝堆得满山遍野,既挡路,又极易失火。滴灌连树苗都只能勉强保住,对林下的地黄更是杯水车薪——压根儿顾不上。
所以它不在受益者名单里。地黄是长在树行边上,借树苗喝剩的侧渗水活下来的。这不是被谁养着,是自己扛着。
这条差别不是文字游戏:写"人工抚育",样本就成栽培品、数据不作数;写"造林地内野生伴生种群",才是大青山真正的野生资源底账。它是野生的,不是养的。
反倒有个发现:越是树死得多、滴灌顾不上的坡面,地黄还绿着。它的抗旱下限,比我们想的低得多。这类地块上的个体,抗逆性最值得记录。
建库 · 记录 · 发声
- 建库:56 条核心文献,成分 19、分子 18、药理 15、工艺 4,44 个唯一 DOI,线索逐条对照核验,含缺口分析。库里连纠错都记着——有一篇原以为是韩国团队,核下来是中国医学科学院加中国药科大学,已更正。
- 记录:野生资源台账,一株一档。编号、日期、地点、生境、部位、状态、照片、鲜重干重、干燥方式,缺一项补一项。别人抄不走的就是这些第一手记录。
- 发声:把散在各处的证据链串成一条线,讲给愿意听的人。《地黄叶研究动态》第 1 期《被扔掉三十年的药叶子》已写就,1837 字,附 11 条引用。
本院为民间研究性质,不设实体、不注册机构,不具医疗资质。
本站内容仅为文献整理、资源记录与科学普及,不作任何疗效宣称,不构成用药建议。涉及成分与含量的结论均标注出处,可回溯核验。
野生植物资源采集遵守当地管护规定,仅作小样记录,不破坏种群。